AAV2がアクチンフィラメントを束ねる構造を解明、遺伝子治療用カプシド設計に新たな手がかり
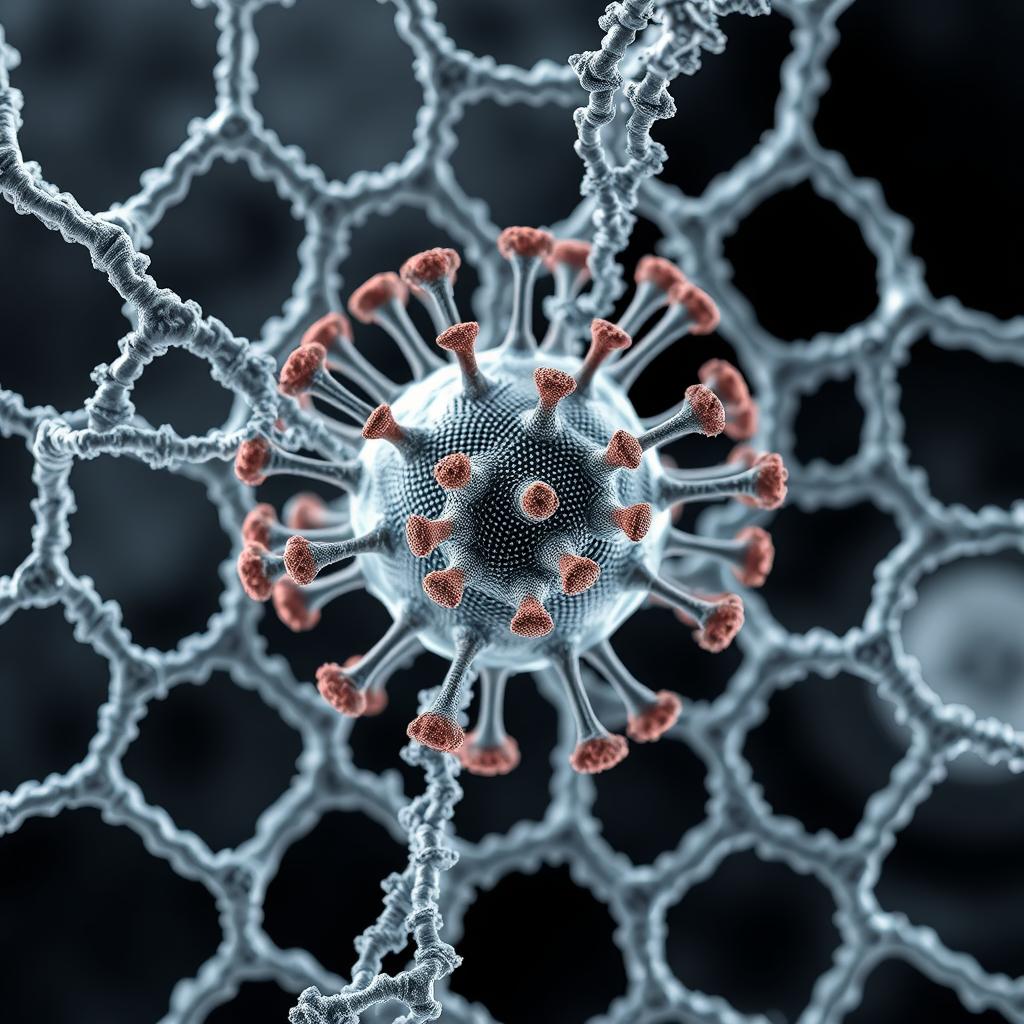
核へ向かうAAV2とアクチンの直接的な相互作用
遺伝子治療ベクターとして用いられるアデノ随伴ウイルス2型(AAV2)がアクチンフィラメントに直接結合し、複数のフィラメントを周期的な六角格子状に束ねるという研究結果が報告された。研究チームはクライオ電子顕微鏡(cryo-EM)で結合構造を解析し、アクチンを束ねないカプシド変異体も作製した。ただし、この相互作用がカプシドを捕捉し、核周辺への蓄積に関与するという説明は研究者らが提示した可能性であり、核輸送の改善や治療効果の向上が実証されたことを意味しない。
AAVカプシドは、遺伝物質を包むウイルスのタンパク質殻である。研究者らは、AAVは単一遺伝子疾患の単回治療や、数年間持続する遺伝子発現に利用される一方、形質導入効率が低いため、治療効果を得るには高用量が必要だと説明した。形質導入とは、ベクターを使って細胞に遺伝物質を送達する過程である。高用量に伴う費用と、まれではあるが生命を脅かす免疫反応が、研究の背景にある。細胞が外来物質を取り込むエンドサイトーシスの後、カプシドが核まで移動する過程には、なお解明すべき点が残されている。
アクチンを束ねる構造と機能をあわせて解析
アクチンフィラメントは細胞骨格を構成する繊維状の構造である。今回の研究は、AAV2がこの構造と直接相互作用するだけでなく、複数のフィラメントを規則的に繰り返す六角格子状に束ねると報告した。これは、カプシドと細胞骨格の接触を構造と機能の両面から調べる手がかりとなる。
研究チームはcryo-EMでAAV2とアクチンフィラメントの結合構造を明らかにし、相互作用部位を特定した。続いて、アクチンを束ねる機能を失ったカプシド変異体を作製した。抄録で確認できる変異体に関する成果は、この束化機能が失われたことまでである。アクチンを束ねないという結果だけから、アクチンとのあらゆる結合がなくなった、あるいは核への移行能力が高まったと解釈することはできない。
研究者らはこうした特性に基づき、「アクチン束化ウイルス」(actin bundling viruses、ABVs)という新たなアクチン結合タンパク質群を提案し、AAV2をその最初のメンバーとして示した。これは研究者らによる分類の提案であり、すべてのAAV型が同じ機能を持つという結果ではない。
核周辺への蓄積を説明する仮説と、今後の検証課題
研究者らは、AAV2とアクチンの相互作用によってカプシドが捕捉され、核周辺への蓄積が媒介される可能性があると解釈した。この仮説は、カプシド設計において細胞内相互作用も検討する理由を示している。しかし、提供された抄録には、変異体と従来のカプシドについて、核への移動速度、核への移行率、遺伝子送達効率を定量的に比較した結果はない。微小管を介した輸送の加速や、核周辺への蓄積の解消も確認できない。
本研究はbioRxivプレプリントとして紹介された構造・相互作用研究である。検討した資料は抄録に限られており、実験系、サンプル数、比較条件、観察期間の詳細は確認できない。したがって、結果はAAV2カプシド設計における新たな研究の方向性として捉えるべきであり、投与量の削減、毒性の軽減、製造費の低減につながるかどうかは、今後の検証が必要である。
研究の要点は、PubMedに収載された「AAV2 Crosslinks Actin Filaments: Implications for AAV Gene Therapy Vector Design」の抄録で確認できる。
Adeno-associated virus(AAV)カプシドは重要な遺伝子治療ベクターであり、単回投与で単遺伝子疾患を治療し、数年にわたる持続的な遺伝子発現を可能にします。しかし、AAV使用の臨床的成功にもかかわらず、低いトランスダクション効率のために治療効果を得るには高用量が必要となり、コストが高騰し、稀ではあるものの生命を脅かす免疫応答が生じます。主要な知識ギャップは、エンドサイトーシス後にカプシドが核へどのように輸送されるかです。本研究では、AAV2とActin filamentとの直接相互作用を特定しました。我々の結果は、AAV2が複数のActin filamentを高度に周期的なHexagonal latticeで束ねることを示しています。したがって、AAV2は新しいクラスのActin結合タンパク質、Actin Bundling Viruses(ABVs)の創始メンバーであると提案します。Cryogenic electron microscopyを用いて、AAV2-Actin filamentの構造を決定し、相互作用インターフェースを同定し、Actinを束ねなくなったカプシド変異体をエンジニアリングしました。これらの結果は、AAV2-Actin相互作用がカプシドを捕捉し、Peri-nuclear蓄積を媒介する原因である可能性を示唆します。総じて、この相互作用はAAV2生物学の現在の理解を拡大し、カプシドエンジニアリングの新たな方向性を提供します。
この研究の実質的な価値は、AAV2カプシドとアクチンの直接的な相互作用を構造的に解析し、アクチン束化機能を変えた変異体を作製した点にある。このような変異体は、束化が核周辺への蓄積や遺伝子送達にどのような役割を果たすかを比較する後続研究の出発点となりうる。ただし、束化機能の喪失がそのまま送達効率の向上を意味するわけではない。設計戦略として活用するには、同一条件下で従来のカプシドと変異体の細胞内分布、核への移行、遺伝子発現を比較し、安全性も別途評価する必要がある。現時点の根拠が示すのは新たな設計変数であり、低用量で高い有効性を示すベクターや、検証済みの毒性指標の確立までを裏付けるものではない。